15 min de leitura
Atualizado em
Ligação Gênica e Mapa Cromossômico: Guia para Concursos
Ligação gênica é a presença de dois ou mais genes no mesmo cromossomo, que por isso tendem a ser herdados juntos. O mapa cromossômico mede a distância entre eles pela frequência de recombinação (1% de recombinação equivale a 1 cM, limite de 50%).
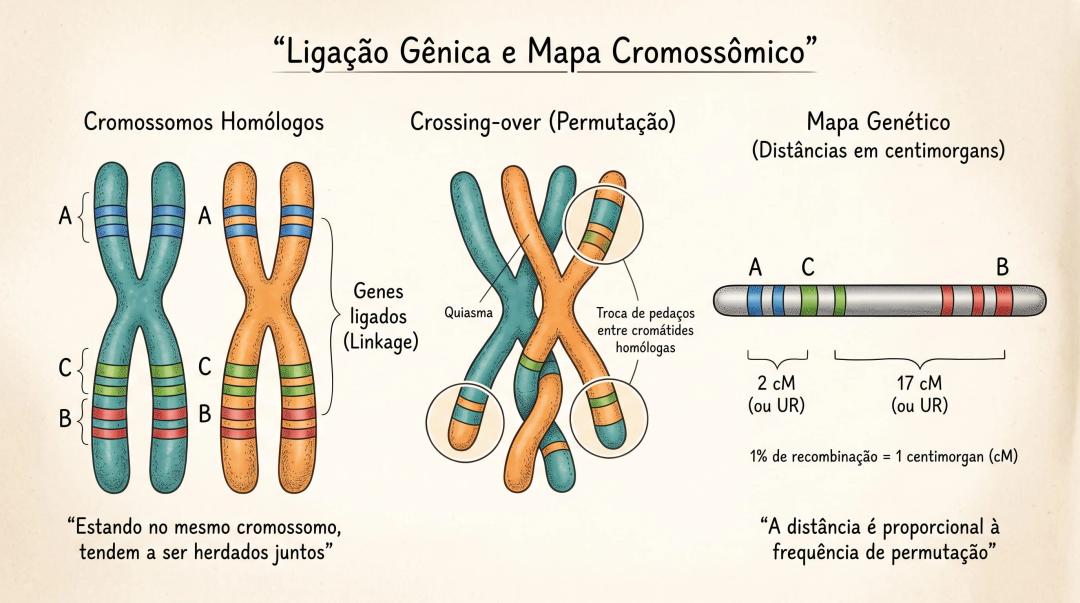
A ligação gênica, também chamada de linkage, é um dos temas de Genética que mais aparecem em provas de Biologia, porque exige cálculo, raciocínio e domínio da meiose. Este guia mostra o conceito, os tipos de ligação, o crossing-over, a conta da frequência de recombinação e a montagem do mapa genético, com exemplos resolvidos.
Índice
O que é ligação gênica (linkage)?
Por que o linkage é exceção à Segunda Lei de Mendel?
Ligação gênica completa ou incompleta?
Como o crossing-over separa genes ligados?
Como calcular a frequência de recombinação?
Como funcionam o cruzamento-teste e o arranjo cis e trans?
O que são interferência e coincidência?
Para que serve o mapeamento genético?
Como reconhecer uma questão de ligação gênica?
O que estudar sobre ligação gênica para a prova?
Perguntas Frequentes sobre Ligação Gênica
O que é ligação gênica (linkage)?
A ligação gênica (linkage) ocorre quando dois ou mais genes diferentes estão no mesmo cromossomo. Como esses genes ocupam posições físicas próximas no mesmo "colar" de DNA, eles tendem a ser transmitidos juntos para os gametas, ou seja, os óvulos e os espermatozoides em humanos. Os genes ficam dispostos em fila nos cromossomos, como contas em um colar.
Essa ideia surgiu no início do século XX, quando Thomas Hunt Morgan e seus alunos, entre eles Alfred Sturtevant, observaram na mosca-das-frutas (Drosophila) que certas características não seguiam as proporções previstas por Mendel. A explicação era simples: os genes estavam no mesmo cromossomo e, por isso, não se separavam livremente.
Por que a ligação gênica importa para a variabilidade?
A diversidade de características de uma espécie é o que permite a adaptação ao ambiente. Ela nasce de dois mecanismos da meiose: a segregação independente e a recombinação gênica. O linkage atua junto com a recombinação: genes ligados tendem a permanecer juntos, mas o crossing-over embaralha esses blocos e gera combinações novas a cada geração, o que alimenta a evolução.
Por que o linkage é exceção à Segunda Lei de Mendel?
Para entender o linkage, é preciso rever as Leis de Mendel. A Segunda Lei de Mendel, ou lei da segregação independente, afirma que genes diferentes se separam de forma independente na formação dos gametas. Para um indivíduo diíbrido (AaBb), ela prevê quatro tipos de gametas em proporções iguais, 1:1:1:1, ou seja, ¼ de AB, ¼ de Ab, ¼ de aB e ¼ de ab.
Essa regra vale para genes em cromossomos diferentes. Também vale para genes no mesmo cromossomo, mas muito distantes um do outro, porque a frequência de recombinação entre eles chega a 50% e o resultado imita a segregação independente.
Quando os genes estão próximos no mesmo cromossomo, a situação muda. Eles são herdados em bloco e as proporções dos gametas deixam de ser 1:1:1:1. Surge uma proporção maior de gametas parentais (os arranjos originais dos cromossomos dos pais) e uma proporção menor de gametas recombinantes (os arranjos novos). Por isso o linkage é tratado como exceção à Segunda Lei de Mendel.
Situação do diíbrido AaBb | Gametas formados | Proporção típica |
|---|---|---|
Segregação independente | AB, Ab, aB, ab | 25% de cada tipo |
Ligação gênica completa | Só parentais (AB e ab) | 50% e 50% |
Ligação gênica incompleta | Parentais e recombinantes | Parentais acima de 50% no total e recombinantes abaixo de 50% |
Ligação gênica completa ou incompleta?
O comportamento dos genes ligados depende da distância entre eles no cromossomo. Existem dois tipos de ligação gênica: a completa e a incompleta.
Ligação gênica completa (linkage total)
Na ligação gênica completa, os genes estão tão próximos que o crossing-over entre eles não acontece. Os genes são sempre herdados juntos e só se formam gametas parentais. Em um diíbrido, isso significa 50% de gametas de um tipo parental e 50% do outro. Por exemplo, se os arranjos originais são AB e ab, os gametas serão 50% AB e 50% ab. Essa situação é rara e só ocorre quando os genes estão extremamente próximos.
Ligação gênica incompleta (linkage parcial)
A ligação gênica incompleta é o tipo mais comum. Os genes estão no mesmo cromossomo, mas a uma distância que permite o crossing-over durante a meiose. Por isso aparecem gametas parentais e recombinantes. Os parentais somam mais de 50% e os recombinantes somam menos de 50%. Em um diíbrido AaBb, uma distribuição possível é 40% AB, 40% ab (parentais), 10% Ab e 10% aB (recombinantes). A soma dos recombinantes revela a distância entre os genes.
Como o crossing-over separa genes ligados?
O crossing-over, também chamado de permutação gênica, é a troca de segmentos entre cromátides não irmãs de cromossomos homólogos. Ele acontece na prófase I da meiose, na fase de paquíteno, quando os homólogos estão pareados. É o processo que separa genes que estavam no mesmo cromossomo e gera os gametas recombinantes.
O que acontece no crossing-over?
Ocorre na prófase I da meiose, entre cromátides não irmãs de homólogos.
A quebra e a religação são precisas, sem perda, ganho ou alteração de nucleotídeos no ponto da troca.
O resultado são gametas recombinantes, com novas combinações de alelos, além dos parentais.
Frequência de recombinação e distância entre os genes
A frequência de recombinação (FR) indica com que frequência dois genes são separados por crossing-over. Quanto maior a distância entre dois genes no mesmo cromossomo, maior a chance de haver permuta entre eles e maior a FR. Genes muito próximos têm FR baixa.
A FR entre quaisquer dois genes nunca passa de 50%. Quando chega a 50%, os genes estão em cromossomos diferentes ou muito distantes no mesmo cromossomo, e a análise de recombinantes não consegue distinguir uma situação da outra.
Como calcular a frequência de recombinação?
Calcular a FR é o passo prático que leva ao mapeamento genético. A conta usa apenas a prole recombinante, que é a que apresenta combinações de alelos ausentes nos cromossomos dos pais.
FR (%) = (número de descendentes recombinantes ÷ número total de descendentes) × 100
Siga três passos: separe os descendentes parentais dos recombinantes, aplique a fórmula e expresse o resultado em porcentagem.
Exemplo simples
"Em um cruzamento-teste, 20 dos 100 descendentes eram recombinantes."
A FR é (20 ÷ 100) × 100 = 20%. Isso significa que os genes estão a 20 unidades de mapa de distância, ou 20 centimorgans (cM).
Exemplo com Drosophila
Em um cruzamento-teste com Drosophila (olhos vermelhos e púrpura, asas normais e vestigiais), foram obtidos 1339 e 1195 descendentes parentais e 151 e 154 recombinantes. Os parentais somam 2534, os recombinantes somam 305 e o total é 2839. Assim, FR = (305 ÷ 2839) × 100 ≈ 10,7%, o que equivale a cerca de 10,7 cM.
Unidade de medida: unidade de mapa e centimorgan
A distância entre genes é medida em unidades de mapa (u.m.) ou centimorgans (cM). Vale a regra: 1% de FR equivale a 1 u.m., que equivale a 1 cM. A unidade homenageia Thomas Hunt Morgan e o primeiro mapa genético foi construído por Alfred Sturtevant, aluno de Morgan.
O que é um mapa cromossômico?
Um mapa cromossômico, também chamado de mapa genético ou mapa de ligação, é a representação gráfica da posição relativa dos genes em um cromossomo. As distâncias vêm da porcentagem de permutações entre os genes. Quanto maior a taxa de recombinação, maior a distância entre eles.
Um mapa genético indica quais genes estão em um cromossomo, a ordem em que se encontram e a distância relativa entre eles, em centimorgans.
Exemplo de construção de um mapa genético
"As frequências de recombinação medidas foram: A e B, 19%; A e C, 2%; B e C, 17%."
As distâncias são 19 cM entre A e B, 2 cM entre A e C e 17 cM entre B e C. Como 2 + 17 = 19, a soma das duas menores distâncias é igual à maior, o que mostra que C está entre A e B. A ordem é A, C, B, com C a 2 cM de A e B a 19 cM de A.
Grupos de ligação
Cada tipo de cromossomo forma um grupo de ligação, isto é, um conjunto de genes herdados juntos. O número de grupos de ligação de uma espécie é igual ao número de tipos de cromossomos. Na espécie humana existem 22 grupos autossômicos, mais o grupo do cromossomo X e o do cromossomo Y, num total de 24.
Como funcionam o cruzamento-teste e o arranjo cis e trans?
O cruzamento-teste é a principal ferramenta para analisar ligação gênica. Ele cruza um indivíduo heterozigoto para os genes em estudo (AaBb) com um homozigoto recessivo (aabb). O recessivo produz um único tipo de gameta (ab), então o fenótipo da prole reflete diretamente os gametas do heterozigoto. Isso facilita a contagem de parentais e recombinantes e torna o cálculo da FR mais preciso.
Para mapear três genes de uma vez, usa-se o cruzamento-teste de três pontos, com um triplo heterozigoto e um testador triplo recessivo. Esse cruzamento permite determinar a ordem e as distâncias entre os três genes.
Arranjo cis e trans
Em um duplo heterozigoto, os alelos podem estar organizados de duas maneiras nos cromossomos homólogos.
No arranjo cis (acoplamento), os alelos dominantes estão no mesmo cromossomo e os recessivos no outro, como AB e ab. No arranjo trans (repulsão), cada cromossomo tem um alelo dominante e um recessivo, como Ab e aB. Saber se o arranjo é cis ou trans é indispensável para identificar quais gametas são parentais e quais são recombinantes.
O que são interferência e coincidência?
O crossing-over não é totalmente independente ao longo do cromossomo. Um crossing-over em uma região pode reduzir a chance de outro em uma região vizinha. Esse efeito é a interferência (I). O coeficiente de coincidência (C) é a razão entre os duplos recombinantes observados e os esperados, e vale a relação I = 1 − C.
Se C = 0, a interferência é completa (I = 1) e não há duplos recombinantes. Se C = 1, não há interferência (I = 0) e os crossing-overs ocorrem de forma independente. Na maioria dos casos a interferência é parcial e C fica entre 0 e 1.
Exemplo de cálculo
Em um cruzamento com Drosophila, a FR do primeiro segmento é 0,064 e a do segundo é 0,132. O esperado de duplos recombinantes é o produto 0,064 × 0,132 ≈ 0,0084, ou 0,84%. Se foram observados 8 duplos recombinantes em 1448 descendentes, a taxa observada é 8 ÷ 1448 ≈ 0,0055, ou 0,55%. Logo, C = 0,0055 ÷ 0,0084 ≈ 0,65 e I = 1 − 0,65 = 0,35, ou 35% de interferência.
Mapa genético ou mapa físico?
Os mapas genéticos (ou mapas de ligação) se baseiam na frequência de recombinação e dão as posições relativas dos genes, em centimorgans. São bons para definir a ordem dos genes, mas podem subestimar distâncias físicas por causa de variações na taxa de recombinação.
Os mapas físicos mostram a posição direta dos genes no DNA, em pares de bases (pb), quilobases (kb) ou megabases (Mb). Têm maior resolução e completam as informações do mapa genético.
Não existe correlação direta entre distância física e distância de mapa. Há hotspots, regiões onde a recombinação é muito frequente apesar de pequena distância física, e coldspots, regiões onde a recombinação é suprimida, como as proximidades dos centrômeros e dos telômeros, mesmo com grande distância física.
Para que serve o mapeamento genético?
O mapeamento genético é usado em várias áreas da ciência e da saúde. As aplicações principais são as listadas a seguir.
Localização de genes e doenças: mapas de ligação, combinados com mapas físicos e sequenciamento, ajudam a localizar genes associados a doenças genéticas, como a fibrose cística (cromossomo 7), e a rastrear essas doenças em famílias, o que apoia o aconselhamento genético.
Melhoramento genético: permite mapear QTLs (locos de características quantitativas) que controlam produção, altura ou resistência a doenças, e usar a seleção assistida por marcadores para escolher plantas e animais sem avaliar a característica diretamente.
Esse trabalho dialoga com a variabilidade genética e as mutações, que explicam de onde vêm as diferenças entre indivíduos que o mapeamento ajuda a localizar.
Genômica comparativa e bioinformática
Os projetos genoma impulsionaram marcadores moleculares (RFLPs, microssatélites, SNPs, AFLPs e RAPDs) e ferramentas de bioinformática. Bancos de dados como GenBank, UniProt e KEGG, e programas como o BLAST, permitem comparar genomas, inferir a função de novos genes e entender padrões de recombinação ao longo da evolução. As técnicas de manipulação genética, clonagem e transgênicos usam esse mesmo conhecimento sobre a posição e a função dos genes.
Como reconhecer uma questão de ligação gênica?
Para saber se uma questão trata de linkage, observe as proporções da prole em um cruzamento-teste ou em um cruzamento entre diíbridos.
Se as proporções forem 1:1:1:1, a segregação é independente. Se a prole tiver apenas combinações parentais, em geral 50% e 50%, a ligação é completa. Se as classes parentais forem bem maiores que 50% no total e as recombinantes menores, a ligação é incompleta, e a soma das porcentagens dos recombinantes dá a distância entre os genes em unidades de recombinação ou cM.
"Uma fêmea duplo heterozigota (AaBb) foi cruzada com um macho duplo recessivo (aabb) e gerou 40% AaBb, 40% aabb, 10% Aabb e 10% aaBb."
As classes AaBb e aabb, que somam 80%, são as parentais. As classes Aabb e aaBb, que somam 20%, são as recombinantes. Como as parentais predominam, trata-se de ligação gênica incompleta, e a distância entre os genes é 10% + 10% = 20 cM.
"Dois genes com FR de 50% sempre estão em cromossomos diferentes."
A afirmação está errada. Uma FR de 50% indica apenas que os genes se comportam como independentes, o que vale tanto para cromossomos diferentes quanto para genes muito distantes no mesmo cromossomo.
O que estudar sobre ligação gênica para a prova?
Os temas de ligação gênica e mapeamento se repetem em provas de concursos e vestibulares. Priorize os pontos a seguir.
Diferença entre a Segunda Lei de Mendel e o linkage, entendendo o linkage como exceção.
Ligação completa e incompleta, e as proporções de gametas de cada uma.
Crossing-over: quando ocorre, sua relação com a distância e sua importância para a variabilidade.
Cálculo da FR, lembrando que 1% de FR equivale a 1 cM e que a FR máxima é 50%.
Construção de mapas simples a partir de FRs e ordenação dos genes.
Cruzamento-teste, arranjo cis e trans, interferência e coincidência.
Como dominar ligação gênica e mapa cromossômico?
A teoria cromossômica da herança, que associou genes aos cromossomos, permitiu construir mapas genéticos com base na frequência de recombinantes. Hoje esses mapas, aliados ao sequenciamento de DNA e à bioinformática, sustentam diagnósticos mais precisos e o melhoramento de plantas e animais. Para a prova, treine o cálculo da FR e a leitura das proporções da prole.
Para continuar, veja o guia Biologia no ENEM: o que mais cai na prova e revise a estrutura do DNA e do RNA.
Estude na plataforma de estudos do Volitivo, pratique com questões gratuitas de Biologia e acesse mais material de apoio para concursos.
Referências Bibliográficas
Khan Academy: Ligação genética e mapeamento
UFS (CESAD): Genética Básica, aula sobre ligação, recombinação e mapeamento gênicos
USP (ESALQ): Ligação gênica, aula de Genética
Perguntas Frequentes sobre Ligação Gênica
O que é ligação gênica ou linkage?
É a presença de dois ou mais genes no mesmo cromossomo, o que faz com que tendam a ser herdados juntos e não segreguem de forma independente.
Qual a diferença entre ligação gênica completa e incompleta?
Na completa não há crossing-over entre os genes e só se formam gametas parentais. Na incompleta há crossing-over, e aparecem gametas parentais e recombinantes, com os parentais em maior proporção.
Como calcular a distância entre genes em um mapa de ligação genética?
Divida o número de descendentes recombinantes pelo total e multiplique por 100. Cada 1% de frequência de recombinação equivale a 1 centimorgan.
O que significa cis e trans na ligação gênica?
Cis (acoplamento) é o arranjo em que os alelos dominantes estão no mesmo cromossomo, como AB e ab. Trans (repulsão) é o arranjo em que cada cromossomo tem um dominante e um recessivo, como Ab e aB.
A ligação gênica é exceção à Segunda Lei de Mendel?
Sim. A Segunda Lei prevê segregação independente, mas genes ligados no mesmo cromossomo são herdados em bloco, com mais gametas parentais que recombinantes.